SVT
Agro-VétoBCPST2026
# Agro-Véto BCPST — SVT (épreuve sur support de documents) 2026 · Corrigé brut
*Corrigé rédigé par IA (La Belle Copie), non officiel. Signalez toute erreur.*
Épreuve de 3 h 30, sans calculatrice, en deux parties indépendantes (géologie, puis biologie, 1 h 45 indicatives chacune). L'annexe A3 n'étant pas reproduite, les constructions demandées sur l'annexe sont décrites en texte ou redessinées en figure. Erreur d'énoncé signalée : la question 5.a renvoie au « document 6 », mais le profil sismique de Mars est le **document 5**, que l'on utilise.
---
# Partie géologie — L'olivine dans tous ses états
## Thème 1 : L'olivine, un minéral abondant sur Terre et dans le système solaire
### Question 1
**1.a** Légendes à porter sur le document 1 :
- **Roche A** (partie sombre, en haut à gauche) : pâte (mésostase) noire à grain très fin, faite de verre et de microlites (plagioclase, pyroxène) non discernables à cette échelle ; quelques petites taches claires (petits cristaux ou vacuoles).
- **Roche B** (partie verte) : cristaux jointifs millimétriques ; **olivine** (grains vert clair à vert olive, vitreux, majoritaires) ; **pyroxènes** (grains sombres, vert foncé à noirs : orthopyroxène brun-noir, clinopyroxène vert émeraude) ; éventuellement rares grains noirs de **spinelle**.
**1.b** La roche A est sombre, et ses cristaux ne sont pas discernables même à l'échelle millimétrique : sa texture est **microlitique** (verre + microlites), celle d'une roche **volcanique** refroidie rapidement. Sa teinte noire traduit une richesse en minéraux ferromagnésiens, donc une composition basique. **La roche A est un basalte.**
**1.c** La roche B est entièrement cristallisée, à cristaux jointifs et visibles à l'œil nu (**texture grenue**). Elle est dominée par l'olivine, avec des pyroxènes, sans quartz ni feldspath : elle est **ultrabasique**. **La roche B est une péridotite** (probablement une lherzolite : olivine + orthopyroxène + clinopyroxène). C'est une roche du manteau, pas une roche plutonique cristallisée à partir d'un magma.
**1.d** Le contact entre A et B est net, et B forme un fragment anguleux englobé par A : **B est une enclave (xénolite) de péridotite mantellique, arrachée et remontée par le magma basaltique** qui a donné A. Ce lien est aussi génétique : un basalte naît de la **fusion partielle d'une péridotite** du manteau (thème 2). Une remontée rapide du magma a préservé l'enclave sans la fondre.
**1.e** La péridotite constitue le **manteau terrestre**, principalement le **manteau supérieur** sous le Moho, à partir de ≈ 7 km sous les océans et ≈ 30 km sous les continents. On la trouve à l'affleurement en enclaves dans les basaltes et dans les ophiolites.
### Question 2
**2.a** Un **silicate** est un minéral dont l'unité structurale est le tétraèdre $[\mathrm{SiO_4}]^{4-}$ (un Si au centre, quatre O aux sommets). Les silicates se classent selon le degré de polymérisation de ces tétraèdres. Dans l'olivine $\mathrm{X_2SiO_4}$, les tétraèdres sont isolés : c'est un **nésosilicate**.
Rôle des cations $\mathrm{X^{2+}}$ (Mg²⁺, Fe²⁺…) logés entre les tétraèdres, en sites octaédriques :
- ils **compensent la charge** négative des tétraèdres ($2 \times (+2) = +4$) ;
- ils **lient entre eux** les tétraèdres isolés, par des liaisons ioniques, et assurent la cohésion du cristal.
Mg²⁺ et Fe²⁺, de même charge et de rayons voisins, se substituent l'un à l'autre : l'olivine est une **solution solide**.
**2.b** Sans Ca ni Mn, les deux olivines se placent **sur le côté inférieur** du triangle (joint Mg₂SiO₄–Fe₂SiO₄), gradué en % de fer :
- olivine 1 (8 % Fe) : point à 8 sur l'axe, dans le champ 0–10 %, donc **forstérite** (Fo₉₂) ;
- olivine 2 (40 % Fe) : point à 40, dans le champ 30–50 %, donc **hyalosidérite** (Fo₆₀).
### Question 3
**3.a** Le document 3 montre que les ondes S se propagent entre les zones 1 et 3 ($V_S$ ≈ 5,2 à 5,6 km/s, en augmentation). Or les ondes S ne se propagent pas dans les liquides : le milieu est **solide**. Cette tranche (≈ 410–660 km) appartient au manteau, dont la roche principale est la **péridotite**, riche en olivine (sous ses formes de haute pression, cf. document 4), avec pyroxènes et grenat.
**3.b** Les zones 1 (≈ 410 km, saut de 4,75 à 5,2 km/s), 2 (≈ 520–550 km, rupture de pente) et 3 (≈ 660 km, saut de 5,6 à 6,1 km/s) sont des **discontinuités sismiques** du manteau : la discontinuité des 410 km, celle des ≈ 520 km et celle des 660 km. Elles délimitent la **zone de transition** ; la discontinuité des 660 km marque la limite **manteau supérieur / manteau inférieur**.
### Question 4
**4.a** Un échantillon de quelques dizaines de µm est placé dans le trou d'un joint métallique, entre les pointes de deux diamants taillés. Une force modérée appliquée sur une très petite surface ($P = F/S$) produit des pressions de plusieurs dizaines de GPa, celles du manteau profond. Un chauffage laser impose la température. Le diamant, très dur, est **transparent** à la lumière et aux rayons X : on peut faire, **in situ** et sous pression, une **diffraction des rayons X**, qui identifie la **structure cristalline** de la phase stable. En répétant la mesure pour de nombreux couples $(P, T)$ et en repérant les changements de structure, on construit le **diagramme de phases**.
**4.b** Les bandes 1, 2 et 3 du document 4 (≈ 410, ≈ 520 et ≈ 670 km) coïncident avec des limites de stabilité de l'olivine :
- zone 1 : olivine α → olivine β (wadsleyite) ;
- zone 2 : β → γ (ringwoodite) ;
- zone 3 : γ → bridgmanite + magnésiowüstite.
Chaque changement de phase produit une phase plus compacte, plus dense et plus rigide, d'où l'augmentation de $V_S$. **Les discontinuités sismiques du document 3 sont la signature de ces transitions de phase**, à composition chimique constante.
**4.c** Pour chaque zone, on lit les températures auxquelles le domaine de coexistence (entre les deux pointillés) traverse la bande de pression :
| Zone | Pression (bande) | Transition | Température lue |
|---|---|---|---|
| 1 | ≈ 13,4–13,9 GPa | α → β | ≈ 1 350–1 550 °C (≈ 1 450 °C) |
| 2 | ≈ 17,6–18,3 GPa | β → γ | ≈ 1 400–1 600 °C (≈ 1 500 °C) |
| 3 | ≈ 23,5–24,1 GPa | γ → Bdg + Mw | ≈ 1 200–1 650 °C (≈ 1 450 °C) |
**Les trois zones sont à des températures voisines, de l'ordre de 1 400 à 1 550 °C.** C'est compatible avec le faible gradient adiabatique du manteau convectif (quelques dixièmes de °C/km, soit environ + 100 °C entre 410 et 660 km), que la précision de lecture ne permet pas de résoudre.
**4.d** Les limites de phase sont des droites **inclinées** dans le plan $(P,T)$ : la pression de transition dépend de la température. La sismologie fournit la profondeur, donc la pression, des discontinuités. Le diagramme expérimental donne alors la seule température compatible avec cette pression. L'olivine étant le minéral majoritaire du manteau supérieur, ses transitions produisent un signal sismique mesurable. **L'olivine sert donc de géothermomètre** à des profondeurs inaccessibles directement. Les variations latérales de profondeur des discontinuités révèlent les anomalies thermiques : pente positive à 410 km et négative à 660 km, donc une zone chaude approfondit la discontinuité des 410 km et remonte celle des 660 km.
**4.e** Bilan atomique pour une olivine 100 % magnésienne :
$$\mathrm{Mg_2SiO_4 \longrightarrow MgSiO_3 + MgO}$$
$$\boxed{\text{bridgmanite} = \mathrm{MgSiO_3}}$$
### Question 5
**5.a** (Document 5.) On lit le profil depuis la surface ($r$ ≈ 3 390 km) :
- jusqu'à $r$ ≈ 3 320 km : vitesses les plus faibles du profil ($V_S$ ≈ 2,6 à 3,5 km/s), c'est la **croûte**, épaisse de quelques dizaines de km (≈ 50–70 km) ;
- de 3 320 à ≈ 1 830 km : $V_P$ ≈ 7,7 à 9,4 km/s et $V_S$ ≈ 4,3 à 4,9 km/s, c'est le **manteau solide** silicaté (≈ 1 500 km d'épaisseur). Il présente deux ressauts : A ($r$ ≈ 2 350 km, soit ≈ 1 040 km de profondeur) et B ($r$ ≈ 2 100 km, soit ≈ 1 280 km), interprétés comme les transitions α → β et β → γ de l'olivine ;
- à $r$ ≈ 1 830 km, **$V_S$ s'annule** et $V_P$ chute de ≈ 9,4 à ≈ 4,8 km/s : c'est la limite manteau/noyau ;
- de 1 830 km au centre : seules les ondes P se propagent, avec $V_P$ croissant de 4,8 à 6 km/s sans discontinuité. C'est un **noyau entièrement liquide** (métallique), sans graine.
**Modèle : Mars est différenciée en croûte, manteau péridotitique solide (avec deux transitions de phase de l'olivine) et noyau liquide de rayon ≈ 1 830 km.**
**5.b** Différences majeures avec la Terre :
- **transitions de phase bien plus profondes** (≈ 1 040 et ≈ 1 280 km au lieu de 410 et ≈ 520 km) : la gravité martienne étant plus faible, la pression ($\approx \rho g z$) augmente plus lentement avec la profondeur ;
- **pas de transition vers la bridgmanite, donc pas d'équivalent du manteau inférieur** : la pression à la base du manteau martien (≈ 20 GPa) reste inférieure aux ≈ 24 GPa nécessaires ;
- **noyau entièrement liquide**, sans graine solide (alors que la Terre a une graine de 1 220 km de rayon) ;
- croûte proportionnellement épaisse (quelques dizaines de km sur une planète deux fois plus petite) ; vitesses maximales du manteau plus faibles (≈ 9,4 km/s contre ≈ 13,7 km/s pour $V_P$ à la base du manteau terrestre).
## Thème 2 : Fusion et formation de l'olivine
### Question 6
**6.a** Graphique choisi (figure 1) : plan température – profondeur portant le **solidus sec** de la péridotite, le **solidus hydraté** et le **géotherme** océanique moyen, qui reste à gauche du solidus sec : le manteau est normalement solide. Une péridotite fond **partiellement** quand son point $(P,T)$ franchit le solidus, de trois façons :
1. **décompression adiabatique** : remontée rapide sans perte notable de chaleur ($T$ baisse de quelques dixièmes de °C/km) alors que le solidus baisse beaucoup plus vite avec la pression ; flèche verticale vers le haut qui coupe le solidus ;
2. **hydratation** : l'apport d'eau abaisse le solidus de plusieurs centaines de degrés, et la roche fond à $P$ et $T$ constantes ;
3. **apport de chaleur** (anomalie thermique d'un panache) : flèche horizontale vers la droite.
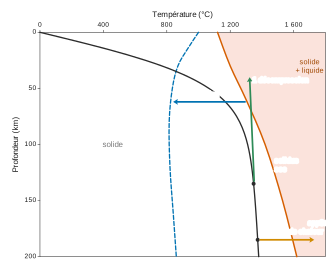
La fusion est partielle (quelques % à ≈ 25 %) ; le liquide, moins dense, se sépare du résidu et migre vers le haut.
**6.b** (10 lignes.) **Dorsales** : l'asthénosphère remonte sous l'axe d'accrétion et fond par décompression adiabatique (≈ 10–25 %), ce qui donne les basaltes (MORB) et gabbros de la croûte océanique. **Rifts continentaux** : l'amincissement lithosphérique provoque, lui aussi, une décompression. **Points chauds** (Hawaï, La Réunion) : un panache plus chaud que le manteau environnant fond par apport de chaleur, auquel s'ajoute la décompression de sa remontée ; basaltes intraplaques. **Zones de subduction** : la déshydratation de la lithosphère plongeante (vers 80–150 km) libère de l'eau qui hydrate le coin de manteau sus-jacent et en abaisse le solidus, d'où des magmas d'arc (andésites, granitoïdes). Sur le graphique de 6.a, on associe la flèche 1 aux dorsales et aux rifts, la flèche 3 aux points chauds et la flèche 2 aux subductions.
**6.c** E est le **point eutectique** du système olivine – clinopyroxène – grenat à 40 kbar : point de concours des trois lignes cotectiques, et point le plus bas de la surface du liquidus (**1 670 °C**). Sa composition est ≈ 6 % d'olivine, 47 % de grenat et 47 % de clinopyroxène. E est la **température de fusion commençante** de toute roche contenant les trois minéraux. **Le premier liquide formé a la composition de E**, quelle que soit la roche, et le reste tant que les trois phases subsistent dans le résidu.
**6.d** Lecture barycentrique de P : **≈ 58 % d'olivine, ≈ 28 % de grenat, ≈ 14 % de clinopyroxène** (± 3 %). C'est une **péridotite à grenat** (lherzolite à grenat), fertile.
**6.e** Le liquide a la composition de E tant que les trois minéraux coexistent. Pour 20 % de fusion, le liquide consomme ≈ 0,47 × 20 ≈ 9,4 % de clinopyroxène, et P en contient 14 % : le clinopyroxène ne serait épuisé que vers $f \approx 14/47 \approx 30$ %. **Le magma a donc la composition de E (≈ 6 % ol, 47 % grt, 47 % cpx).**
Résidu Q : conservation de la masse, $\mathrm{P} = 0{,}2\,\mathrm{E} + 0{,}8\,\mathrm{Q}$, soit
$$\mathrm{Q} = \frac{\mathrm{P} - 0{,}2\,\mathrm{E}}{0{,}8}\;:\quad \text{ol} \approx \frac{58-1{,}2}{0{,}8} \approx 71\ \%,\quad \text{grt} \approx \frac{28-9{,}4}{0{,}8} \approx 23\ \%,\quad \text{cpx} \approx \frac{14-9{,}4}{0{,}8} \approx 6\ \%.$$
Construction sur l'annexe : Q est sur la droite (EP), **au-delà de P** par rapport à E, avec $\mathrm{PQ} = \frac{0{,}2}{0{,}8}\,\mathrm{EP} = 0{,}25\,\mathrm{EP}$.
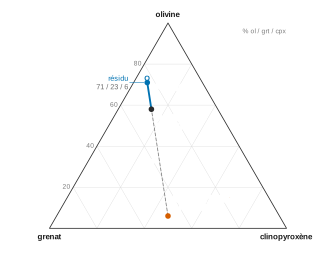
$$\boxed{\text{magma} \approx \mathrm{E}\ (6/47/47)\,;\quad \mathrm{Q} \approx 71\ \%\ \text{ol},\ 23\ \%\ \text{grt},\ 6\ \%\ \text{cpx}}$$
**6.f** Un taux de fusion de l'ordre de 20 % est typique d'une **dorsale océanique** (fusion par décompression adiabatique), et peut aussi se rencontrer à l'aplomb d'un point chaud. Dans ce cas, **P** est la péridotite asthénosphérique fertile (lherzolite à grenat) qui remonte. **Q** est le résidu **appauvri** (plus riche en olivine, pauvre en clinopyroxène), qui forme le manteau lithosphérique sous la croûte océanique ; il évoluerait vers une harzburgite pour des taux de fusion plus élevés. Le liquide extrait cristallise en basaltes et gabbros.
### Question 7
Dans le document 7 (lame mince, lumière polarisée analysée), l'olivine est un **phénocristal** de plusieurs millimètres (barre de 1 mm), à contour **automorphe** (faces planes, forme losangique), au sein d'une pâte de **microlites** en baguettes et de verre (texture microlitique porphyrique). Un cristal ne développe ses faces propres que s'il croît librement dans un liquide, sans gêne par d'autres cristaux. **L'olivine fait donc partie des premiers minéraux formés.** Elle a cristallisé lentement en profondeur (chambre magmatique), avant que l'éruption ne fige le liquide restant en microlites et en verre. C'est cohérent avec la série de Bowen : l'olivine, minéral ferromagnésien le moins polymérisé, cristallise à la plus haute température.
### Question 8
**8.a** Le cristal montre un cœur et une bordure de teintes de polarisation différentes : c'est une **zonation** (cristal zoné), d'origine chimique.
**8.b** Le document 8 décrit une **solution solide totale** : il n'y a pas d'eutectique, mais un fuseau entre le liquidus (au-dessus) et le solidus (en dessous). On refroidit un liquide de composition $x = 0{,}80$ :
- à **≈ 1 840 °C**, la verticale $x = 0{,}80$ atteint le liquidus ; le premier solide, lu sur le solidus à la même température, a pour composition **$x \approx 0{,}96$** (Fo₉₆) ;
- lorsque $T$ diminue, le liquide s'appauvrit en Mg (il suit le liquidus vers la gauche) et le solide qui se dépose aussi (il suit le solidus) : chaque couche nouvelle est plus ferreuse ;
- à l'équilibre parfait, la cristallisation s'achève à **≈ 1 670 °C** (verticale × solidus), le dernier liquide ayant $x \approx 0{,}47$, et le cristal final est homogène à $x = 0{,}80$ ;
- mais la diffusion de Fe et Mg dans le solide est **lente** devant le refroidissement : les couches déjà formées ne se rééquilibrent pas avec le liquide et gardent leur composition.
**Il en résulte un cristal zoné, à cœur magnésien et bordures de plus en plus ferreuses** (la cristallisation peut alors se poursuivre en dessous de 1 670 °C, jusqu'à des bordures plus riches en fer que Fo₄₇).
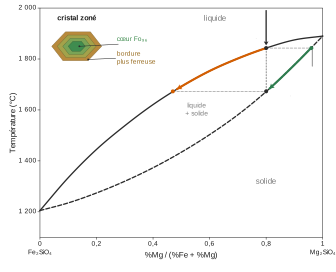
**8.c** Le cœur s'est formé en premier, à la température la plus haute, où le solide en équilibre avec le liquide est le plus proche du pôle réfractaire (Mg₂SiO₄, fusion à 1 890 °C contre 1 205 °C pour Fe₂SiO₄). **Le cœur est plus riche en magnésium** (≈ Fo₉₆) que la bordure.
**8.d** L'analyse prédit une cristallisation entre ≈ 1 840 et ≈ 1 670 °C. Or les laves basaltiques réelles, qui contiennent des phénocristaux d'olivine (document 7), sont émises vers **1 100–1 250 °C**, et l'olivine y cristallise vers 1 200–1 300 °C : soit **plusieurs centaines de degrés d'écart**. Le modèle reste qualitativement juste (cœur magnésien, zonation), mais il est quantitativement faux. Explications :
- un magma n'est pas un système binaire : SiO₂, Al₂O₃, CaO, Na₂O, etc. abaissent fortement les températures de liquidus (effet des constituants multiples, comparable à l'abaissement eutectique) ;
- les **volatils** (H₂O surtout) abaissent encore le liquidus ;
- le document 8 est établi à 0,1 MPa et en système sec, alors que la cristallisation profonde se fait sous pression.
## Thème 3 : Altération de l'olivine
### Question 9
**9.a** Comme pour un feldspath, l'eau chargée en CO₂ (acide carbonique) attaque le minéral : les protons rompent les liaisons du réseau, les cations passent en solution et le CO₂ est converti en HCO₃⁻. C'est une **hydrolyse**, forme d'altération chimique.
Par exemple, $2\,\mathrm{KAlSi_3O_8} + 2\,\mathrm{CO_2} + 11\,\mathrm{H_2O} \to \mathrm{Al_2Si_2O_5(OH)_4} + 2\,\mathrm{K^+} + 2\,\mathrm{HCO_3^-} + 4\,\mathrm{H_4SiO_4}$ (feldspath → kaolinite).
Différence : l'équation 1 ne produit **aucune phase solide**. Faute d'aluminium, il ne se forme pas d'argile : l'olivine est **entièrement dissoute** (hydrolyse totale, congruente). Le processus **consomme 4 CO₂ par Mg₂SiO₄**.
**9.b** Légende du diagramme de Goldschmidt : abscisse **rayon ionique** $r$, ordonnée **charge** $z$ ; domaines séparés par des droites passant par l'origine, d'équation $z/r$ = constante (potentiel ionique) :
- potentiel ionique faible ($z/r \lesssim 3$) : **cations solubles** (Na⁺, K⁺, Ca²⁺, Mg²⁺, Fe²⁺), exportés en solution ;
- potentiel ionique intermédiaire : **hydrolysats insolubles** (Al³⁺, Fe³⁺, Ti⁴⁺ ; Si⁴⁺ en limite), qui restent sur place sous forme d'hydroxydes ou d'argiles ;
- potentiel ionique élevé ($z/r \gtrsim 10$) : **anions complexes solubles** (oxyanions : C⁴⁺ → HCO₃⁻/CO₃²⁻, N⁵⁺ → NO₃⁻, S⁶⁺ → SO₄²⁻, P⁵⁺ → PO₄³⁻).
Mg²⁺ ($z/r \approx 2/0{,}72 \approx 2{,}8$) est un cation soluble, ce que confirme l'équation 1 ; Si, en limite, part ici en solution sous forme de H₄SiO₄.
**9.c** Équation 2 :
$$\mathrm{Ca^{2+} + 2\,HCO_3^- \longrightarrow CaCO_3 + CO_2 + H_2O}$$
Organismes marins qui assurent cette précipitation : **coccolithophoridés**, **foraminifères**, **coraux**, **mollusques**, échinodermes, algues rouges calcaires, cyanobactéries (stromatolithes).
### Question 10
**10.a** Pour une mole d'olivine, on somme (1) et 2 × (2) :
$$\mathrm{Mg_2SiO_4 + 4\,CO_2 + 4\,H_2O \to H_4SiO_4 + 4\,HCO_3^- + 2\,Mg^{2+}}$$
$$\mathrm{2\,Ca^{2+} + 4\,HCO_3^- \to 2\,CaCO_3 + 2\,CO_2 + 2\,H_2O}$$
$$\boxed{\mathrm{Mg_2SiO_4 + 2\,CO_2 + 2\,H_2O + 2\,Ca^{2+} \to 2\,CaCO_3 + H_4SiO_4 + 2\,Mg^{2+}}}$$
L'altération capte 4 CO₂, la précipitation en rend 2 : **bilan net, 2 CO₂ atmosphériques piégés par Mg₂SiO₄**, sous forme de carbonate solide. Avec $M(\mathrm{Mg_2SiO_4}) \approx 141$ g/mol, une tonne d'olivine piège $\frac{10^6}{141} \times 2 \times 44 \approx 6 \times 10^5$ g, soit **≈ 0,6 t de CO₂** (et jusqu'à ≈ 1,25 t tant que le carbone reste dissous sous forme HCO₃⁻). La démarche est donc théoriquement pertinente : elle accélère le puits naturel « altération des silicates + sédimentation carbonatée » (régulation du climat à long terme), en augmentant la surface réactive (broyage) et en renouvelant la solution au contact des grains (vagues). En baissant la teneur en CO₂ de l'atmosphère, on réduit l'effet de serre.
**10.b** **Diminue** : l'atmosphère (CO₂). **Augmentent** : l'hydrosphère (carbone inorganique dissous HCO₃⁻, transitoirement), puis la lithosphère (roches carbonatées, durablement).
**10.c** **Effet à long terme.** (1) La réaction est lente, même sur des grains broyés : la dissolution prend des années à des décennies, puis la précipitation des carbonates et leur sédimentation s'étalent dans le temps. (2) Le carbone gagne le réservoir carbonaté, dont le temps de résidence est de l'ordre de la dizaine à la centaine de millions d'années : le stockage est durable. Le procédé relève donc du cycle long du carbone ; il ne peut pas corriger rapidement le réchauffement actuel.
**10.d** Une **ressource géologique** est une substance naturelle (minérale ou énergétique) dont la concentration, résultant de processus géologiques, la rend exploitable par l'être humain dans des conditions techniques et économiques données. Elle est **non renouvelable** à l'échelle humaine. Le gisement est la concentration exploitable en un lieu ; la réserve est la part connue et rentable.
**10.e** Gisements continentaux d'olivine : les **péridotites mantelliques portées à l'affleurement**, en particulier les **ophiolites** obductées (Oman, Nouvelle-Calédonie, Alpes) et les massifs de péridotites (ex. dunites de Norvège), ainsi que les niveaux de dunite des complexes ultrabasiques.
**10.f** Limites :
- **bilan carbone** : extraction, broyage fin (très énergivore) et transport émettent du CO₂, qu'il faut retrancher du gain ;
- **échelle** : à ≈ 0,6 t de CO₂ par tonne d'olivine, compenser ≈ 40 Gt de CO₂ par an exigerait des dizaines de Gt de roche par an ;
- **cinétique lente** et efficacité réelle difficile à mesurer en milieu ouvert ;
- **impacts environnementaux** : libération de métaux (Ni, Cr) toxiques pour les écosystèmes littoraux, turbidité, hausse locale du pH, destruction des milieux à l'emplacement des mines et des plages ;
- **santé** : poussières fines, minéraux fibreux associés (amiante) ;
- risque de servir d'alibi à la non-réduction des émissions ; coût, acceptabilité.
### Question 11
**11.a** Horizons d'un sol, de haut en bas :
- **O** : litière, matière organique peu décomposée ;
- **A** : horizon organo-minéral riche en humus, siège de l'activité biologique ;
- (**E** : horizon éluvial, appauvri par lessivage, dans certains sols) ;
- **B** : horizon d'accumulation (argiles, oxydes de fer), minéral ;
- **C** : roche-mère altérée et fragmentée ;
- **R** : roche-mère saine.
Dans le dispositif, la couche de mélange correspond aux horizons supérieurs (O/A) mêlés à l'olivine.
**11.b** Document 10D : à **19 °C**, le Mg²⁺ lessivé augmente pendant ≈ 40 jours puis se stabilise vers **5 à 5,5 u.a.** ; à **4 °C**, il reste plus faible et irrégulier, entre **≈ 1,7 et 3 u.a.** (hormis un premier point à 4,4). **La solution de lessivage est environ deux fois plus riche en Mg²⁺ à 19 °C.** Le Mg²⁺ provient de l'hydrolyse de l'olivine (équation 1), dont la vitesse augmente avec la température (cinétique chimique). S'y ajoute l'activité biologique du sol (respiration des racines et des micro-organismes, qui enrichit l'eau du sol en CO₂, donc en acidité), elle aussi accrue à 19 °C. L'altération chimique est plus efficace sous climat chaud.
**11.c** Ce qui manque :
- un **témoin sans olivine**, à chaque température : le sol libère lui-même du Mg²⁺, rien ne prouve donc que le Mg²⁺ mesuré vienne de l'olivine ;
- des **répétitions** (une seule carotte par température, aucune statistique possible) ;
- une mesure du **carbone** (alcalinité, HCO₃⁻, CO₂ du sol), puisque le Mg²⁺ n'est qu'un indicateur indirect de la séquestration ;
- une **durée** plus longue que 120 jours, des conditions plus proches du terrain (végétation, cultures, variations saisonnières), le suivi d'autres éléments libérés (Ni, Cr) et une granulométrie contrôlée.
**11.d** **Épandre de la roche silicatée broyée (olivine, ou basalte) sur les sols agricoles** (altération forcée des sols). Côté climat, l'hydrolyse consomme du CO₂, et les HCO₃⁻ sont exportés par les eaux de drainage vers l'océan. Côté cultures, la libération de cations (Mg²⁺, Ca²⁺) agit comme un **amendement** : elle remonte le pH des sols acides (effet de chaulage) et apporte des **nutriments** (Mg, constituant de la chlorophylle ; Si, utile aux Poacées). Les rendements peuvent ainsi augmenter. Le travail du sol renouvelle en outre les surfaces réactives.
**11.e** Limites :
- **accumulation de Ni et de Cr** (métaux des péridotites) dans les sols et les récoltes ;
- **alcalinisation excessive** des sols déjà neutres ou calcaires (carences en fer et en zinc), effets sur la faune et la microflore du sol ;
- **poussières** et minéraux fibreux pour les opérateurs ;
- **bilan carbone** de l'extraction, du broyage et du transport, et quantités énormes à épandre ;
- **vérification difficile** du CO₂ réellement séquestré (Mg²⁺ retenu sur le complexe argilo-humique, reprécipitation de carbonates dans le sol, dégazage en rivière) ;
- coût, et risque de détourner de la réduction des émissions.
---
# Partie biologie — *Wolbachia*
## Thème 1 : *Wolbachia*, une bactérie symbiotique
### Question 1a
Les barres d'échelle (0,6 µm ; 500 nm) montrent que les objets mesurent ≈ 0,5–1 µm, et des détails bien plus fins sont visibles (membranes, enveloppe nucléaire, vésicules). Le pouvoir séparateur du microscope optique (≈ 0,2 µm) ne le permet pas. Les images en niveaux de gris de **coupes** ultrafines sont caractéristiques de la **microscopie électronique à transmission (MET)**, dont la résolution atteint le nanomètre.
### Question 1b
Deux arguments, tirés du document 1A :
- **pas de noyau** ni d'organite délimité par une membrane dans les structures *w*, alors que le noyau *n* de la cellule hôte est visible sur le même cliché : organisation **procaryote** ;
- **taille** de ≈ 0,5 à 1 µm, celle d'une bactérie (bien plus petite qu'une cellule eucaryote, plus grande qu'un virus).
### Question 1c
Après infection, *Wolbachia* est **intracellulaire**, dans le **cytoplasme** de la cellule hôte, **enfermée dans des vésicules** (avant la co-culture, elle était dans le milieu extérieur, au contact de la cellule).
### Question 2a
Document 2A : sans vitamine B7, la métamorphose chute de ≈ 89 % à ≈ 65 % (différence significative) : **la B7 est nécessaire au développement**. Document 2B : après un traitement antibiotique éliminant *Wolbachia*, la teneur en B7 des punaises baisse de ≈ 2,2 à ≈ 1,5 ng/mg (significatif) : **Wolbachia fournit une part de la B7** de l'hôte. Or la punaise est hématophage, et le sang est pauvre en vitamines B. **Wolbachia fournit donc de la B7, nécessaire à la métamorphose : elle favorise le développement de la punaise** (relation mutualiste).
### Question 2b
Mesurer le **taux de métamorphose** de punaises traitées à l'antibiotique, **avec ou sans apport de vitamine B7** dans leur repas, en comparaison de punaises non traitées. Si l'apport de B7 restaure la métamorphose des punaises traitées, la chaîne *Wolbachia* → B7 → métamorphose est établie. On ajoute un lot de punaises non infectées traitées à l'antibiotique, pour vérifier que celui-ci n'est pas toxique par lui-même. Variante : réinfecter des punaises traitées par *Wolbachia* et suivre le retour à la normale.
### Question 3a
(5 lignes.) La RT-PCR comporte une rétro-transcription des ARN en ADN complémentaire, puis une amplification PCR de ce dernier avec des amorces spécifiques ; en version quantitative, la fluorescence mesure la quantité d'ARN de départ. Comme DENV-2 est un virus **à ARN**, elle quantifie directement le génome viral, donc la multiplication du virus, avec une grande sensibilité. Le Western blot, lui, détecte une **protéine** à l'aide d'anticorps : moins sensible, semi-quantitatif, mais il renseigne sur la protéine effectivement produite.
### Question 3b
Il manque un **témoin de charge** : le marquage, dans chaque piste, d'une protéine constitutive du moustique (actine par exemple), pour vérifier que les quantités de protéines déposées sont comparables. Il manque aussi la **condition doublement négative** (ni *Wolbachia* ni DENV-2), un **marqueur de masse moléculaire** et le nombre de répétitions.
### Question 3c
(10 lignes.) Le document 3A montre qu'après infection par DENV-2 les moustiques porteurs de *Wolbachia* contiennent ≈ 0,2 millier de copies d'ARN viral, contre ≈ 3,4 milliers chez les moustiques dépourvus de la bactérie : la charge virale est divisée par plus de 10. Le document 3B le confirme au niveau des protéines : la protéine virale n'est détectée que chez les moustiques sans *Wolbachia* ; en présence de la bactérie (bande anti-Wolb positive), la protéine virale est indétectable, bien que le moustique ait été exposé au virus. Le document 3C donne une piste d'explication : chez des moustiques porteurs de *Wolbachia* et non infectés par DENV-2, quatre gènes de l'immunité sont significativement surexprimés. *Wolbachia* stimule donc en permanence l'immunité innée de son hôte. **Conclusion : *Wolbachia* rend le moustique résistant à DENV-2** — multiplication du virus fortement réduite, pas de protéine virale produite — vraisemblablement en maintenant actives ses défenses. Le moustique devient un mauvais vecteur du virus.
### Question 4a
**Régions test (4C, région 10).** Avant le lâcher de janvier 2017, moins de 10 % des *A. aegypti* sont porteurs de *Wolbachia*. Après le lâcher, la proportion augmente régulièrement : ≈ 50 % au bout de quelques mois, plus de 90 % en janvier 2018. Elle se maintient ensuite entre 80 et 100 % jusqu'en 2020, sans nouveau lâcher. L'infection **envahit la population et s'y maintient**.
**Régions contrôle (4D, région 13).** Le taux reste nul toute l'année 2017, puis augmente lentement et irrégulièrement à partir de 2018 pour atteindre ≈ 20–40 % en 2020 (jusqu'à ≈ 80 % pour une région). Aucun lâcher n'y a été fait : la bactérie s'est **propagée spontanément** depuis les régions voisines, les régions test et contrôle étant imbriquées sur la carte 4A.
**Conséquence (4B).** La proportion de personnes infectées par DENV-2 est de ≈ 0,02–0,03 % dans les régions test contre ≈ 0,10 % dans les régions contrôle, soit une réduction d'un facteur 3 à 4.
### Question 4b
(4 lignes.) Oui : un unique lâcher suffit à installer durablement la bactérie (plus de 90 % de moustiques porteurs pendant trois ans), sans insecticide, et les cas humains de dengue sont divisés par 3 à 4 ; le dispositif se propage même aux régions voisines. Réserves : le témoin est « contaminé » par cette propagation, ce qui conduit plutôt à sous-estimer l'effet ; l'étude porte sur un seul virus, un seul pays et trois ans, et ne dit rien de l'apparition éventuelle d'une résistance du virus ou d'une perte d'efficacité de la bactérie.
## Thème 2 : *Wolbachia*, une bactérie parasite
### Question 5
Le document 5 donne quatre croisements :
| | Femelle non infectée | Femelle infectée |
|---|---|---|
| **Mâle non infecté** | descendance viable, non infectée | descendance viable, infectée |
| **Mâle infecté** | **embryons morts** | descendance viable, infectée |
**Un parasite.** Le croisement mâle infecté × femelle non infectée tue toute la descendance : la bactérie réduit à zéro le succès reproducteur de ce couple, alors qu'elle tire profit de son hôte (elle s'y multiplie et s'y transmet). Elle est donc un **parasite** (bénéfice pour la bactérie, préjudice pour l'hôte), qui manipule la reproduction de son hôte.
**Une espèce qui se propage.** Toute la descendance d'une femelle infectée est infectée, quel que soit le mâle : la transmission maternelle est totale. De plus, une femelle infectée se reproduit avec succès avec tous les mâles, tandis qu'une femelle non infectée ne le peut qu'avec un mâle non infecté. Plus la proportion de mâles infectés augmente, plus les femelles non infectées sont pénalisées : la fréquence des individus infectés augmente à chaque génération, jusqu'à envahir la population.
### Question 6a
Dans le document 6, le premier croisement (mâle infecté × femelle non infectée, sans modification) donne en moyenne ≈ 5 % d'embryons éclos (points dispersés de 0 à 20 %), alors que le dernier croisement (mâle infecté × femelle infectée) en donne ≈ 95 %. **C'est cohérent avec le document 5** : la quasi-totalité des embryons meurt dans la combinaison mâle infecté × femelle non infectée, et la descendance est viable quand la femelle est infectée. Le document 6 apporte en outre une information quantitative : la mortalité n'est pas absolue, ≈ 5 % des embryons éclosent malgré tout.
### Question 6b
Comparons les ovocytes de femelles non infectées, fécondés par des mâles infectés :
- ovocyte exprimant *cidB* seul : ≈ 5 % d'éclosion, comme sans modification → CidB n'apporte rien ;
- ovocyte exprimant *cidA* : ≈ 95 % → viabilité restaurée ;
- ovocyte exprimant *cidA* et *cidB* : ≈ 95 % → le sauvetage persiste.
**La condition suffisante est l'expression de *cidA* (présence de CidA) dans l'ovocyte** ; l'infection de la femelle elle-même n'est pas requise, seul compte le produit du gène bactérien.
### Question 7a
Document 7A : avec l'ADN seul, puis avec l'ADN et CidA, les quatre bandes (6,0 ; 5,0 ; 3,0 ; 1,5 kb) sont présentes et identiques ; avec l'ADN et CidB, **aucune bande n'est visible**. CidB dégrade donc l'ADN, quelle que soit la taille des molécules : c'est une **nucléase**, et CidA n'a aucun effet sur l'ADN.
Dans un embryon issu d'une femelle non infectée, CidB (apportée par le spermatozoïde) **dégraderait l'ADN**, en particulier celui du noyau d'origine paternelle, ce qui empêcherait le développement et expliquerait la mort des embryons des documents 5 et 6.
### Question 7b
Document 7B : la levure transformée par un plasmide vide forme des colonies (la transformation n'est pas toxique) ; avec *cidB* seul, aucune colonie (CidB est toxique) ; avec *cidB* + *cidA*, les colonies réapparaissent (CidA neutralise CidB) ; avec *cidB* + *cidA\** (CidA privée de son domaine de liaison à CidB), aucune colonie.
**Mécanisme proposé : CidA se lie directement à CidB par son domaine de liaison et forme un complexe inactif**, dans lequel le site actif de la nucléase est masqué. La neutralisation exige donc une interaction physique entre les deux protéines, et non une action indirecte. C'est un système de type toxine (CidB) – antitoxine (CidA).
### Question 7c
Ajouter la condition manquante : **ADN + CidA + CidB**. Si le modèle est exact, les quatre bandes doivent être conservées, ce qui démontrerait directement, sur l'ADN, la protection par CidA. On peut compléter par une piste ADN + CidA\* + CidB (dégradation attendue) et par une piste avec CidB dénaturée par la chaleur (contrôle de la nature enzymatique de l'effet).
### Question 8a
L'immunomarquage par fluorescence **localise** une protéine donnée, grâce à un anticorps spécifique couplé à un fluorochrome, **sans détruire la structure du tissu et de la cellule**. C'est indispensable ici : la question n'est pas de savoir si CidA et CidB existent, mais **où** elles se trouvent — dans quelles cellules du testicule, à quel stade de la différenciation, et dans lequel des deux pronucléus de l'œuf fécondé. L'utilisation de fluorochromes différents permet de superposer les marquages (ADN, CidA, CidB, H4ac) sur la même préparation.
### Question 8b
*cidA* et *cidB* sont des gènes **bactériens** : ils ne peuvent être exprimés que dans un individu infecté. C'est ce que l'on observe : les deux protéines sont détectées dans le testicule du mâle infecté (8A), alors qu'aucune n'est synthétisée par la femelle non infectée. Les protéines détectées dans l'ovocyte de cette femelle (8B) n'ont donc pas pu y être produites : elles ont été **apportées par le spermatozoïde**. **L'infection par *Wolbachia* est la condition de l'expression de CidA et CidB.**
### Question 8c
**Dans le testicule (8A).** Les spermatides en cours de différenciation (flèche entière) présentent un marquage pour l'ADN, CidA, CidB et H4ac. Les spermatozoïdes différenciés (tête de flèche) ne présentent plus ni H4ac — ce qui confirme, d'après la légende, qu'il s'agit bien des cellules les plus avancées — ni CidA, alors que **CidB** y est encore présente.
**Dans l'ovocyte fécondé (8B).** Le pronucléus mâle montre un marquage CidB intense et concentré ; aucun marquage CidA n'est visible, ni sur le pronucléus mâle ni sur le pronucléus femelle.
**Seule CidB est transmise** : elle persiste dans les spermatozoïdes différenciés, puis se retrouve dans l'ovocyte, associée au pronucléus mâle. CidA, elle, disparaît en fin de différenciation et n'est pas transmise. Ce sont les protéines, et non les bactéries, qui passent par le spermatozoïde.
### Question 8d
Le croisement réalisé est mâle infecté × femelle non infectée. L'ovocyte reçoit CidB (8c) mais ne contient pas CidA, puisque la femelle n'est pas infectée (8b). Or le document 6 montre que, dans ces conditions, seuls ≈ 5 % des embryons éclosent. **L'embryon n'a donc quasiment aucune chance de survivre.**
**Rôles.** CidB est une **toxine** (nucléase) déposée dans le spermatozoïde au cours de la spermatogenèse d'un mâle infecté : dans l'œuf, elle dégrade l'ADN du pronucléus mâle. CidA est l'**antitoxine**, fournie par le cytoplasme de l'ovocyte d'une femelle infectée, qui se lie à CidB et la neutralise. La survie de l'embryon suppose donc que la femelle soit infectée : c'est le mécanisme de l'**incompatibilité cytoplasmique**, qui rend compte des quatre cases du document 5 et explique la propagation de la bactérie.
## Thème 3 : *Wolbachia*, une bactérie transmise
### Question 9a
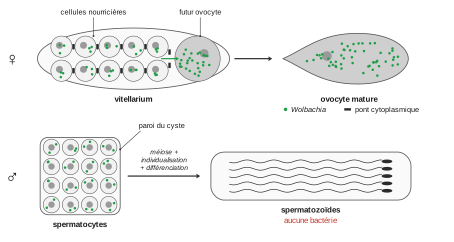
Observations. Document 9A : la fluorescence verte des *Wolbachia* est présente dans le vitellarium, et en particulier dans le cytoplasme de l'ovocyte. Document 9B : au stade spermatocyte (1), de nombreuses bactéries (points jaunes) sont présentes dans le cyste, associées aux cellules germinales ; au stade spermatozoïde (2), il n'y en a plus au niveau des spermatozoïdes différenciés.
Report sur le schéma 9C :
### Question 9b
**Voie femelle.** Les bactéries sont présentes dans le cytoplasme de l'ovocyte (9A). Or le zygote reçoit la quasi-totalité de son cytoplasme de l'ovocyte : toutes les cellules de l'embryon en hériteront. Ceci rend compte du document 5, où toute la descendance d'une femelle infectée est infectée.
**Voie mâle.** Les bactéries, présentes au stade spermatocyte, ne sont plus associées aux spermatozoïdes différenciés (9B) : le gamète mâle n'en transmet pas. La transmission est donc **strictement maternelle**.
**Explication chez les mâles.** Lors de la différenciation des spermatozoïdes, chaque spermatide élimine la quasi-totalité de son cytoplasme et de ses organites ; les *Wolbachia*, bactéries cytoplasmiques, sont évacuées avec ce cytoplasme résiduel. Même si quelques-unes subsistaient, le spermatozoïde n'apporte presque pas de cytoplasme à l'ovocyte. Le mâle infecté ne transmet donc que des **protéines** déjà déposées (CidB, thème 2), et non les bactéries. Ce mode de transmission est analogue à celui des mitochondries.
### Question 10a
Les genres porteurs d'une même espèce de *Wolbachia* sont dispersés dans l'arbre. L'espèce 2 (magenta) est présente chez *Wasmannia*, *Sericomyrmex*, *Trachymyrmex*, *Atta* et *Pheidole*, mais aussi chez *Azteka*, genre d'une sous-famille distincte ; entre ces genres s'intercalent de nombreux genres dépourvus de cette espèce. De même, l'espèce 4 (noir) est présente chez *Crematogaster*, *Metapone*, *Pheidole* et *Aenictus*, ce dernier très éloigné des autres.
Si la présence d'une espèce donnée de *Wolbachia* était une innovation **héritée**, elle serait apparue une fois chez un ancêtre commun et tous ses descendants la porteraient : les porteurs formeraient un groupe **monophylétique**. Ce n'est pas le cas. **Les genres porteurs d'une même espèce de *Wolbachia* forment un groupe polyphylétique** : le caractère est apparu plusieurs fois indépendamment (homoplasie), et il ne peut pas être une innovation évolutive partagée par filiation.
### Question 10b
Puisque la répartition ne suit pas les relations de parenté, la bactérie n'a pas été transmise de l'ancêtre à ses descendants : elle est passée **directement d'une lignée à une autre**. C'est une **transmission horizontale** (interspécifique), par contact écologique : partage d'un milieu, prédation ou cannibalisme, échanges de nourriture entre individus, ou vection par un parasite commun.
### Question 10c
L'espèce 3 (vert) est observée chez *Apterostigma* et *Pheidole*. En transmission strictement verticale, elle aurait été héritée de leur ancêtre commun le plus récent, et serait présente chez **tous** les descendants de cet ancêtre. Sur le document 10, il faudrait donc placer un point vert en face de *Apterostigma*, *Myrmicocrypta*, *Cyphomyrmex*, *Sericomyrmex*, *Trachymyrmex*, *Acromyrmex*, *Atta* et *Pheidole* — c'est-à-dire sur tout le clade issu de cet ancêtre, et sur aucun autre genre.
### Question 11a
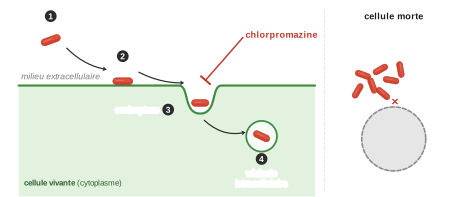
Lecture préalable. Document 11A : au contact de cellules de drosophile vivantes (*live*), les bactéries (rouges), d'abord extérieures, sont progressivement retrouvées **à l'intérieur** de la cellule (0 h, 2 h, 4 h) ; au contact de cellules mortes (*dead*), elles restent agglomérées à l'extérieur. L'entrée exige donc une cellule vivante, donc un processus actif de la cellule hôte. Document 11B : la proportion de cellules infectées est de ≈ 0,26 / 0,22 / 0,27 dans les témoins à 1, 2 et 3 jours, et chute significativement en présence de chlorpromazine (≈ 0,12 / 0,09 / 0,06). La chlorpromazine inhibant l'endocytose, **l'entrée des bactéries se fait par endocytose**.
Schéma fonctionnel attendu :
### Question 11b
Le document 10 impose une transmission horizontale entre lignées de fourmis ; le document 11 en donne le **mécanisme cellulaire** : une bactérie présente dans le milieu extérieur peut entrer, par endocytose, dans une cellule vivante d'un nouvel hôte, et l'énoncé indique que ce résultat peut être étendu à tous les Arthropodes.
Il reste à amener la bactérie au contact des cellules d'une autre fourmi. Les occasions sont nombreuses chez des insectes sociaux : échanges de nourriture entre ouvrières, toilettage, consommation de proies ou de cadavres infectés, partage du nid, parasites communs. Les bactéries ingérées ou introduites peuvent alors coloniser les cellules du nouvel hôte selon le cycle précédent. Si elles atteignent la lignée germinale d'une femelle, la transmission verticale prend le relais et l'infection se fixe dans la nouvelle lignée, ce qui explique la distribution en mosaïque du document 10.
### Question 12a
*Wolbachia* est une bactérie **intracellulaire**, présente en très faible quantité chez la guêpe après qu'elle a consommé une larve, et non cultivable sur milieu usuel. La PCR amplifie de façon exponentielle une séquence choisie, grâce à des amorces **spécifiques** de l'ADN de *Wolbachia* : elle permet de détecter la bactérie avec une grande **sensibilité** et une grande **spécificité**, au milieu de l'ADN de la guêpe, sur un simple broyat et pour un grand nombre d'individus. L'intensité des bandes donne de plus une indication semi-quantitative de la charge bactérienne.
### Question 12b
**Document 12B.** Après consommation de larves contaminées, l'ADN de *Wolbachia* est détecté dès le premier jour, avec une bande intense, puis les bandes s'affaiblissent progressivement et disparaissent à la dernière piste : la bactérie ne se multiplie pas chez la guêpe et n'y persiste que quelques jours. La guêpe n'est donc pas un hôte durable.
**Document 12C.** La capacité de la guêpe à contaminer des aleurodes sains dépend du délai : ≈ 60 % d'aleurodes infectés en moyenne si le contact a lieu un jour après la contamination, ≈ 30 % à deux jours, et **0 % à partir du troisième jour**.
**Conclusion.** Bien que la bactérie survive mal chez la guêpe, celle-ci est contaminante pendant environ deux jours ; comme elle se nourrit de nombreuses larves et pond à l'intérieur de celles-ci, elle peut, pendant cette fenêtre, contaminer plusieurs larves successives, et la bactérie se propage de proche en proche dans la population d'aleurodes. La guêpe est un **vecteur transitoire** et non un hôte. **Conditions de transmission :** des bactéries encore vivantes (l'ADN reste détectable plus longtemps que les bactéries ne restent infectieuses), un contact dans les **deux jours** suivant la contamination de la guêpe, et un contact intime avec les tissus de la larve (alimentation, et surtout ponte à l'intérieur de la larve, l'ovipositeur jouant le rôle d'un instrument contaminé).
### Question 13
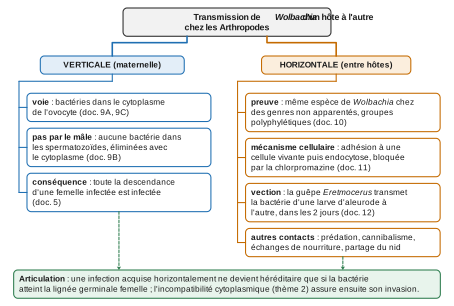
Carte mentale de la transmission de *Wolbachia* d'un hôte à l'autre chez les Arthropodes :
Aide sur le corrigé
Connectez-vous pour demander une explication.