Biologie
Agro-VétoBCPST2026
Cherchez d'abord seul. En cas de blocage, ouvrez une indication, réessayez, puis seulement la solution.
# Agro-Véto BCPST — Biologie 2026 · Corrigé guidé
*Corrigé rédigé par IA (La Belle Copie), non officiel. Signalez toute erreur.*
## Présentation du sujet
**Nature de l'épreuve.** Synthèse de biologie de 3 heures, sans calculatrice, ni table, ni document. Le sujet tient en un intitulé, **« Les interactions protéines – ligands »**, suivi d'une annexe de quatre pages, le « formulaire de biochimie ». On y trouve :
- deux acides gras (palmitique, saturé ; arachidonique, polyinsaturé), le glycérol, l'éthanolamine, la choline et le cholestérol ;
- des oses et des polyosides : ribose, désoxyribose, fructose, saccharose, amidon, glycogène, cellulose, pectine, chitine et acide hyaluronique (exemple de glycosaminoglycane) ;
- les cinq bases azotées, le NAD⁺ et le coenzyme A ;
- les vingt acides α-aminés de la série L.
Il n'y a ni question intermédiaire, ni document à analyser, ni donnée numérique : tout le travail consiste à construire et à rédiger une démonstration organisée.
**Thème et notions mobilisées.** Le sujet est transversal mais centré sur un chapitre de première année : la relation structure – fonction des protéines. Il mobilise :
- en biochimie : structure des protéines, liaisons faibles, site de liaison, spécificité, affinité, saturation, coopérativité et allostérie (myoglobine et hémoglobine), cinétique enzymatique, inhibitions, coenzymes ;
- en biologie cellulaire : transporteurs membranaires, cytosquelette, contraction, adhérence ;
- en biologie moléculaire : régulation de l'expression génétique (opéron lactose, récepteurs nucléaires) ;
- en physiologie : transduction, régulation de la glycémie, transport de l'O₂ ;
- en immunologie : anticorps, CMH, sélection clonale ;
- en biologie végétale : RuBisCO, symbiose rhizobienne, auxine ;
- enfin, évolution et applications : familles multigéniques, pharmacologie, herbicides, résistances.
**À quoi sert l'annexe.** Elle ne pose aucune question, mais elle indique la largeur attendue : les ligands peuvent être des lipides, des glucides, des nucléotides, des coenzymes, et les chaînes latérales des acides aminés sont « l'alphabet » des sites de liaison. Il faut s'en servir pour **nommer précisément** les molécules et pour justifier la chimie d'un site (Lys et Arg chargées positivement face à un phosphate, Leu et Phe apolaires face à une chaîne carbonée). Attention, l'annexe contient trois coquilles à ne pas recopier : la thréonine est abrégée « Tre » au lieu de Thr, l'asparagine « Asp » au lieu d'Asn, et le tryptophane est dessiné avec un noyau indole mal représenté.
**Difficulté et longueur.** Le sujet est classique, et c'est ce qui le rend exigeant. Tout le monde a de quoi écrire, et la tentation est grande de réciter : un chapitre « structure des protéines », un chapitre « enzymes », un chapitre « hémoglobine ». La différence se fait sur trois points :
- une **définition rigoureuse** du ligand et de l'interaction (non covalente, réversible, spécifique, saturable) ;
- un **formalisme quantitatif** minimal et juste ($K_d$, saturation, Michaelis – Menten, Hill) ;
- une **démonstration** : montrer que les mêmes propriétés expliquent des fonctions très diverses, et que la réversibilité est ce qui rend la régulation possible.
**Gestion du temps conseillée.** Environ 30 minutes de brouillon pour analyser les termes, problématiser, bâtir le plan et choisir les exemples et les schémas. Une quinzaine de minutes pour rédiger l'introduction au propre. Environ 2 heures pour le développement, en trois parties équilibrées, en dessinant les schémas au fur et à mesure. Enfin 10 minutes pour la conclusion et 5 minutes de relecture (noms de molécules, unités, flèches).
**Ce qu'il ne faut pas laisser passer.** La définition de $K_d$ et sa lecture (concentration de demi-saturation : petit $K_d$ = forte affinité), la comparaison myoglobine – hémoglobine avec ses deux courbes, l'équation de Michaelis – Menten reliée à la saturation, au moins un exemple végétal et un exemple microbien, et l'extinction du signal comme preuve du rôle de la réversibilité.
## Partie 1 — Préparer la synthèse au brouillon
Le brouillon est l'endroit où se gagne la note : définir chaque terme, transformer l'intitulé en question, choisir un plan qui démontre, et répartir les exemples. Les quatre étapes ci-dessous correspondent aux trente premières minutes.
### Étape 1 — Analyser les termes du sujet
> [!INDICATION]
> Définissez séparément « protéine », « ligand » et « interaction », puis demandez-vous ce que le pluriel et le trait d'union ajoutent.
> [!INDICATION]
> Un bon critère pour délimiter le sujet : qu'est-ce qui distingue une interaction d'une modification chimique de la protéine ? Pensez à la nature des liaisons et à la réversibilité.
> [!INDICATION]
> Faites l'inventaire des tailles de ligands possibles, de l'ion à la macromolécule, et vérifiez que l'annexe en fournit plusieurs familles.
#### Solution
- **Protéine** : polymère d'acides α-aminés de la série L reliés par des liaisons peptidiques, dont la séquence (codée par un gène) détermine un repliement tridimensionnel. Ce repliement crée des **sites de liaison** en rapprochant dans l'espace des résidus éloignés dans la séquence.
- **Ligand** : toute entité qui se fixe spécifiquement sur un site d'une protéine. Ce peut être un ion (Ca²⁺, Fe²⁺, Zn²⁺), un gaz (O₂, CO₂), une petite molécule organique (oses, acides gras, nucléotides, coenzymes, hormones), ou une macromolécule (protéine, ADN, polyoside). Le mot vient du latin *ligare*, lier.
- **Interaction** : formation d'un complexe protéine – ligand stabilisé par des liaisons **non covalentes**. Elle est donc réversible et décrite par un équilibre chimique.
**Délimitation.** Une phosphorylation, une glycosylation ou une acétylation sont des modifications covalentes. Elles sortent du cadre et ne seront citées que pour contraste : la fixation de l'ATP sur une kinase est une interaction protéine – ligand, mais le transfert du phosphate sur la protéine cible n'en est pas une. Les interactions protéine – protéine et protéine – ADN entrent dans le sujet : un ligand n'est pas nécessairement petit.
**Le pluriel** impose une typologie : diversité des ligands, des liaisons et des fonctions. **Le trait d'union** désigne le complexe, c'est-à-dire la relation entre les deux partenaires, et non chacun d'eux isolément.
> [!PIEGE]
> Le hors-sujet le plus fréquent consiste à réciter pendant une heure la structure des protéines (structures primaire à quaternaire) sans jamais parler de liaison d'un ligand. La structure n'est utile que pour expliquer comment naît un site de liaison.
> [!METHODE]
> Pour tout sujet de synthèse, écrivez au brouillon une définition de chaque mot, puis une phrase qui dit ce qui est **exclu** du sujet. Cette phrase de délimitation figurera dans l'introduction.
### Étape 2 — Formuler la problématique
> [!INDICATION]
> Cherchez une tension, voire un paradoxe, entre une propriété physico-chimique de la liaison et ce qu'elle permet en biologie.
> [!INDICATION]
> Comparez l'énergie d'une liaison faible avec l'énergie thermique $RT$. Que faut-il pour qu'un complexe soit à la fois stable et spécifique ? Et que permet le fait qu'il se défasse ?
#### Solution
Les liaisons qui stabilisent un complexe protéine – ligand sont individuellement de l'ordre de l'agitation thermique ($RT \approx 2{,}5\ \mathrm{kJ\cdot mol^{-1}}$ à 298 K). On en tire une problématique en deux temps :
**Comment des liaisons individuellement faibles peuvent-elles produire une reconnaissance à la fois spécifique et réversible, et comment cette double propriété fait-elle de l'interaction protéine – ligand le mécanisme élémentaire commun à la catalyse, au transport, à la communication, à la reconnaissance et à la régulation du vivant ?**
Le premier temps (faiblesse, puis spécificité) appelle une partie physico-chimique. Le second (réversibilité, puis régulation et information) appelle les parties fonctionnelles.
> [!JURY]
> Une problématique doit être une vraie question, à laquelle la conclusion répond explicitement. Une reformulation de l'intitulé (« Nous allons voir les interactions protéines – ligands ») ne compte pas comme problématique.
### Étape 3 — Construire le plan
> [!INDICATION]
> Un plan progressif va du mécanisme à ses conséquences. Demandez-vous quelle partie doit fournir le vocabulaire et le formalisme aux suivantes.
> [!INDICATION]
> Méfiez-vous des plans « par types de ligands » (ions, petites molécules, macromolécules) ou « par disciplines » (biochimie, physiologie animale, biologie végétale) : ils obligent à répéter trois fois la même chose.
> [!INDICATION]
> Pour la dernière partie, cherchez ce qu'apporte la réversibilité en plus de la spécificité : l'information, la régulation et l'action de l'évolution ou de l'Homme.
#### Solution
Plan retenu, progressif :
| Partie | Idée directrice | Sous-parties et exemples-clés |
|---|---|---|
| I. Un complexe non covalent, spécifique, saturable et réversible | les propriétés et leur description quantitative | I.1 site de liaison et complémentarité ; I.2 liaisons faibles additives ; I.3 $K_d$, saturation, énergie, affinité ajustée ; I.4 coopérativité et allostérie (myoglobine / hémoglobine) |
| II. Mécanisme élémentaire des fonctions cellulaires | ces propriétés suffisent à engendrer les fonctions | II.1 catalyse (Michaelis – Menten, état de transition, coenzymes, inhibiteurs, RuBisCO, ATP synthase) ; II.2 transport et stockage (Hb, albumine, lipoprotéines, transferrine, perméases, pompes, canaux) ; II.3 ligands macromoléculaires (cytosquelette, myosine, adhérence, expansines, facteurs de transcription, opéron lactose) |
| III. Une interaction modulable | la réversibilité rend possibles l'information et la régulation | III.1 récepteurs et transduction ; III.2 reconnaissance (anticorps, CMH, facteurs Nod, fécondation) ; III.3 régulation (PFK-1, glycémie, auxine) ; III.4 évolution et applications (globines, coévolution, médicaments, glyphosate, outils) |
Prévoir 8 à 10 schémas : site de liaison, courbes Mb/Hb, transition T ⇄ R, cinétique avec inhibiteurs, protéines membranaires, cycle de la myosine, opéron lactose, cascade de transduction, anticorps – antigène, régulation de la PFK-1. Un **schéma-bilan** final peut récapituler les propriétés et les fonctions.
> [!METHODE]
> Vérifiez l'équilibre de votre plan avec une grille : chaque grande partie doit contenir au moins un exemple animal, un exemple végétal ou microbien, et un schéma. Pour ce sujet, cela donne par exemple RuBisCO et opéron lactose en II, facteurs Nod et auxine en III.
### Étape 4 — Rédiger l'introduction
> [!INDICATION]
> Une introduction complète comporte une accroche, des définitions, une délimitation, une problématique et l'annonce du plan.
> [!INDICATION]
> Pour l'accroche, cherchez un fait concret qui montre que la reconnaissance entre molécules est un problème difficile dans une cellule réelle.
#### Solution
Une bactérie comme *Escherichia coli* renferme quelques millions de molécules protéiques, de plusieurs milliers d'espèces différentes, plongées dans un cytoplasme encombré où diffusent des centaines de métabolites. Chaque protéine y trouve pourtant, parmi toutes ces molécules, celle ou celles avec lesquelles elle doit travailler.
Une **protéine** est un polymère linéaire d'acides α-aminés de la série L unis par des liaisons peptidiques ; sa séquence détermine un repliement tridimensionnel qui façonne des **sites de liaison**. Un **ligand** est toute entité chimique qui se fixe spécifiquement sur un tel site : ion, gaz, petite molécule organique (oses, acides gras, nucléotides, coenzymes comme le NAD⁺ ou le coenzyme A) ou macromolécule. L'**interaction protéine – ligand** est la formation d'un complexe stabilisé par des liaisons non covalentes. Elle est réversible et régie par un équilibre chimique, ce qui la distingue d'une modification covalente comme la phosphorylation.
**Problématique** : celle de l'étape 2.
**Annonce du plan.** Nous établirons d'abord les bases moléculaires et la description quantitative de l'interaction (I). Nous montrerons ensuite que ce mécanisme sous-tend les grandes fonctions cellulaires (II). Nous verrons enfin que, parce qu'elle est modulable, cette interaction porte l'information, fonde la reconnaissance, permet la régulation intégrée et constitue une cible pour l'évolution comme pour l'Homme (III).
> [!PIEGE]
> Ne pas annoncer un plan différent de celui qui est réellement suivi : les titres des parties doivent reprendre les termes de l'annonce.
## Partie 2 — Rédiger le développement
Le développement doit **démontrer**. Chaque paragraphe commence par une idée, l'illustre par un exemple précis et se termine par une phrase qui le rattache au fil directeur (spécificité, affinité, saturation, réversibilité, modulation).
### Étape 5 — Partie I : un complexe non covalent, spécifique, saturable et réversible
> [!INDICATION]
> Partez du repliement de la protéine pour expliquer l'existence d'un site, puis de la nature des liaisons pour expliquer la spécificité et la réversibilité.
> [!INDICATION]
> Écrivez l'équilibre P + L ⇌ PL et sa constante de dissociation, puis exprimez la fraction de sites occupés en fonction de la seule concentration du ligand libre.
> [!INDICATION]
> Pour l'allostérie, une comparaison à deux protéines est plus démonstrative qu'une description isolée : choisissez deux protéines qui fixent le même ligand mais diffèrent par leur structure quaternaire.
#### Solution
**I.1. Le repliement crée un site de liaison complémentaire du ligand.** Le squelette peptidique est plan au niveau de la liaison peptidique ; les rotations autour des carbones α permettent hélices α (liaisons hydrogène entre le C=O du résidu *i* et le N–H du résidu *i* + 4) et feuillets β. En milieu aqueux, l'**effet hydrophobe** regroupe les chaînes apolaires (Val, Leu, Ile, Phe, Met) au cœur de la protéine et laisse au contact de l'eau les chaînes polaires et ionisables (Ser, Thr, Asn, Gln, Asp, Glu, Lys, Arg, His). La surface est creusée de poches.
Le site présente avec son ligand une **complémentarité stérique**, de forme, et une **complémentarité chimique** : un donneur de liaison hydrogène fait face à un accepteur, un phosphate ou un carboxylate fait face à une Lys ou une Arg protonée, une chaîne carbonée fait face à des résidus apolaires. Cette double complémentarité fonde la **spécificité**. Le modèle « clé – serrure » de Fischer est complété par l'**ajustement induit** de Koshland : le site se réorganise lors de la fixation.
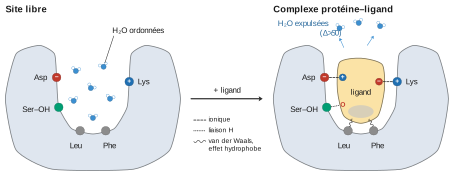
**I.2. Des liaisons faibles, nombreuses et additives.** L'énergie de chaque liaison est comparable à $RT \approx 2{,}5\ \mathrm{kJ\cdot mol^{-1}}$ à 298 K.
| Interaction | Ordre de grandeur en milieu aqueux | Exemple |
|---|---|---|
| Liaison hydrogène | quelques kJ·mol⁻¹ à environ 20 kJ·mol⁻¹ | OH d'une Ser / C=O d'un ligand |
| Interaction ionique | quelques kJ·mol⁻¹ à environ 20 kJ·mol⁻¹, atténuée par l'eau | Arg⁺ / phosphate |
| Van der Waals | 1 à 4 kJ·mol⁻¹ par contact | Leu / chaîne d'acide gras |
| Effet hydrophobe | surtout entropique, proportionnel à la surface apolaire enfouie | poche à cholestérol |
| Coordination | plus forte, variable | Fe²⁺ de l'hème / O₂ ; Zn²⁺ / His |
| *Covalente (comparaison)* | 200 à 500 kJ·mol⁻¹ | hors du sujet |
Les liaisons hydrogène et de van der Waals n'agissent qu'à quelques dixièmes de nanomètre et avec une orientation précise. Seul un ligand exactement complémentaire établit simultanément des dizaines de contacts sur une interface de quelques nm², soit quelques centaines d'Ų : **la spécificité naît de l'additivité**. Aucune liaison isolée ne résiste à l'agitation thermique : **le complexe est réversible**, c'est un équilibre. Les rares liaisons covalentes entre une protéine et une petite molécule (intermédiaire acyl-enzyme des protéases à sérine, acétylation de la cyclo-oxygénase par l'aspirine) relèvent de la catalyse ou d'une inhibition irréversible et sortent du cadre de l'équilibre.
**I.3. Description quantitative.** Pour une protéine à un site :
$$\mathrm{P} + \mathrm{L} \;\underset{k_{-1}}{\overset{k_{1}}{\rightleftharpoons}}\; \mathrm{PL}, \qquad K_d = \frac{[\mathrm{P}][\mathrm{L}]}{[\mathrm{PL}]} = \frac{k_{-1}}{k_{1}}$$
Avec $[\mathrm{PL}] = [\mathrm{P}][\mathrm{L}]/K_d$, la fraction de sites occupés est
$$\theta = \frac{[\mathrm{PL}]}{[\mathrm{P}]+[\mathrm{PL}]} = \frac{[\mathrm{P}][\mathrm{L}]/K_d}{[\mathrm{P}] + [\mathrm{P}][\mathrm{L}]/K_d} \quad\Longrightarrow\quad \boxed{\theta = \frac{[\mathrm{L}]}{K_d+[\mathrm{L}]}}$$
et la concentration de complexe vaut $[\mathrm{PL}] = B_{\max}\,[\mathrm{L}]/(K_d+[\mathrm{L}])$, où $B_{\max}$ est la concentration totale de sites.
- La courbe est une **hyperbole** qui tend vers 1 : la liaison est **saturable**, car les sites sont en nombre fini. C'est le critère expérimental d'une liaison spécifique, alors qu'une fixation non spécifique croît linéairement.
- Pour $[\mathrm{L}] = K_d$, on a $\theta = 1/2$ : $K_d$ est la concentration de demi-saturation, et **un petit $K_d$ signifie une forte affinité**.
- L'enthalpie libre standard d'association, avec $c^\circ = 1\ \mathrm{mol\cdot L^{-1}}$, s'écrit $\Delta_r G^\circ_{\text{assoc}} = RT\ln(K_d/c^\circ)$. Sans calculatrice, on compte $RT\ln 10 \approx 5{,}7\ \mathrm{kJ\cdot mol^{-1}}$ par décade. Pour $K_d = 10^{-6}\ \mathrm{mol\cdot L^{-1}}$ :
$$\boxed{\Delta_r G^\circ_{\text{assoc}} \approx -6 \times 5{,}7 \approx -34\ \mathrm{kJ\cdot mol^{-1}}}$$
et pour $K_d = 10^{-10}\ \mathrm{mol\cdot L^{-1}}$, environ $-57\ \mathrm{kJ\cdot mol^{-1}}$. Ces valeurs restent bien inférieures à l'énergie d'une seule liaison covalente.
**L'affinité est ajustée à la fonction** :
| Complexe | $K_d$ ou $K_M$ typique (mol·L⁻¹) | Signification |
|---|---|---|
| Enzyme / substrat | $10^{-6}$ à $10^{-3}$ | liaison modérée, compatible avec une catalyse rapide |
| Récepteur / hormone | $10^{-10}$ à $10^{-8}$ | détection de messagers très dilués |
| Anticorps / antigène | $10^{-11}$ à $10^{-7}$ | neutralisation durable |
| LacI / opérateur | de l'ordre de $10^{-13}$ | site occupé en permanence en l'absence d'inducteur |
| Avidine / biotine | de l'ordre de $10^{-15}$ | outil de laboratoire quasi irréversible |
Une enzyme qui fixerait trop fortement son substrat le stabiliserait dans le complexe ES et augmenterait la barrière à franchir vers l'état de transition.
**I.4. Coopérativité et allostérie.** Quand une protéine oligomérique porte plusieurs sites, la fixation d'un ligand sur l'un modifie l'affinité des autres : c'est la **coopérativité**, ou effet homotrope. La courbe devient **sigmoïde** et l'on utilise l'équation de Hill, $\theta = [\mathrm{L}]^n/(K^n + [\mathrm{L}]^n)$, avec $n = 1$ sans coopérativité et $n$ inférieur au nombre de sites en cas de coopérativité positive.
La **myoglobine**, monomère, a une courbe hyperbolique ($P_{50} \approx 3$ mmHg, environ 0,4 kPa). Encore saturée à plus de 90 % à 30 mmHg, c'est une protéine de **réserve**. L'**hémoglobine**, tétramère $\alpha_2\beta_2$, a une courbe sigmoïde ($n \approx 2{,}8$ ; $P_{50} \approx 26$ mmHg, environ 3,5 kPa). Saturée à environ 97 % à 100 mmHg dans le poumon, elle ne l'est plus qu'à 60 à 75 % dans les tissus (30 à 40 mmHg) : la sigmoïde amplifie la différence de saturation entre les deux sites. C'est une protéine de **transport**.
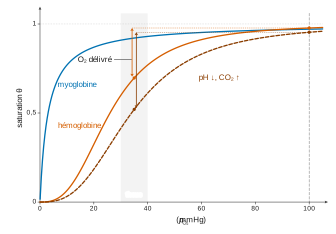
*Le décalage de la courbe « pH ↓, CO₂ ↑ » est illustratif ; tissus pris à 35 mmHg.*
Le mécanisme est **allostérique**. La fixation d'O₂ attire le Fe²⁺ dans le plan de l'hème, entraîne l'histidine proximale et son hélice ; le mouvement se propage aux interfaces et fait basculer le tétramère de l'état **T** (tendu, faible affinité, ponts salins entre sous-unités) vers l'état **R** (relâché, forte affinité). Dans le modèle concerté de Monod, Wyman et Changeux, T et R préexistent en équilibre et le ligand stabilise l'état qu'il fixe le mieux.
*Schéma 3.* Tétramère T à gauche (ponts salins), tétramère R à droite (quatre O₂). Flèche vers R : O₂. Flèche vers T : H⁺, CO₂, 2,3-BPG, fixés sur des sites distincts de l'hème.
Des effecteurs **hétérotropes**, fixés sur d'autres sites, modulent l'affinité. Le **2,3-BPG** se loge dans la cavité centrale de l'état T et abaisse l'affinité ; sa concentration augmente en altitude. Par l'**effet Bohr**, H⁺ et CO₂ des tissus actifs déplacent la courbe vers la droite. L'**hémoglobine fœtale** ($\alpha_2\gamma_2$) fixe moins le 2,3-BPG, d'où une affinité supérieure qui permet le transfert placentaire.
*Transition* : ces propriétés physico-chimiques suffisent-elles à rendre compte des fonctions cellulaires ?
> [!METHODE]
> Pour toute courbe de saturation, donnez trois lectures : la forme (hyperbole ou sigmoïde, et pourquoi), le plateau (saturation, nombre fini de sites) et la demi-saturation ($K_d$, $K_M$ ou $P_{50}$, mesure inverse de l'affinité).
> [!PIEGE]
> Deux confusions classiques. La première consiste à associer une forte affinité à un grand $K_d$ : c'est l'inverse. La seconde consiste à opposer allostérie et coopérativité : la coopérativité est l'effet **homotrope** (le ligand module sa propre fixation), l'allostérie englobe aussi les effets **hétérotropes**. L'étymologie aide : *allos*, « autre », et *stereos*, « solide, forme dans l'espace ».
> [!JURY]
> Les applications numériques, même de tête, gagnent à être conduites jusqu'au bout avec leur unité et leur convention (ici l'enthalpie libre standard **d'association**, rapportée à $c^\circ$).
### Étape 6 — Partie II : un mécanisme élémentaire des fonctions cellulaires
> [!INDICATION]
> Prenez trois grandes fonctions (catalyser, transporter, construire et lire) et montrez pour chacune que la première étape est la fixation d'un ligand.
> [!INDICATION]
> Pour la catalyse, comparez la forme de l'équation de Michaelis – Menten à celle de l'isotherme de la partie I, et précisez à quelle condition $K_M$ mesure une affinité.
> [!INDICATION]
> Pour le muscle, reconstruisez le cycle de la myosine en vous demandant, à chaque étape, quel ligand est fixé à la tête et quelle est alors son affinité pour l'actine.
#### Solution
**II.1. Catalyse enzymatique.** Une enzyme accélère une réaction thermodynamiquement possible sans modifier l'équilibre et sans être consommée. La catalyse commence par une interaction protéine – ligand : la formation du complexe ES dans le **site actif**.
$$\mathrm{E} + \mathrm{S} \;\underset{k_{-1}}{\overset{k_{1}}{\rightleftharpoons}}\; \mathrm{ES} \;\xrightarrow{\;k_{\mathrm{cat}}\;}\; \mathrm{E} + \mathrm{P}$$
En vitesse initiale, avec l'hypothèse d'un état quasi stationnaire pour ES :
$$\boxed{v_0 = \frac{V_{\max}[\mathrm{S}]}{K_M + [\mathrm{S}]}}, \qquad K_M = \frac{k_{-1}+k_{\mathrm{cat}}}{k_1}, \qquad V_{\max} = k_{\mathrm{cat}}[\mathrm{E}]_{\mathrm{tot}}$$
C'est la même forme que l'isotherme de I.3. Le plateau traduit la saturation des sites actifs ; $K_M$ est la concentration de demi-vitesse maximale et ne s'identifie à $K_d$ que si $k_{\mathrm{cat}} \ll k_{-1}$.
Le site actif fait plus que fixer :
- il fixe **mieux l'état de transition** que le substrat, ce qui abaisse l'énergie d'activation (le lysozyme distord un résidu osidique de la paroi bactérienne) ;
- il assure une **spécificité de réaction**, grâce à l'orientation des groupements et aux chaînes catalytiques : His, Asp, Glu en catalyse acide-base, Ser nucléophile, ions métalliques ;
- il fixe souvent un **coenzyme**. Le NAD⁺ de l'annexe accepte un ion hydrure, soit deux électrons et un proton (glycolyse, cycle de Krebs). Le coenzyme A porte des groupements acyle sur son thiol (acétyl-CoA, acyl-CoA de la β-oxydation). Ces cosubstrats se fixent, sont modifiés, se détachent et sont régénérés ailleurs : ils **couplent** des voies métaboliques. Les groupements prosthétiques (hème, FAD lié), eux, restent fixés à demeure.
Les **inhibiteurs** sont des ligands concurrents. Un inhibiteur compétitif, analogue du substrat, occupe le site actif : $K_M$ apparent augmente, $V_{\max}$ est inchangée et l'inhibition est levée par excès de substrat. Un inhibiteur non compétitif se fixe ailleurs : $V_{\max}$ diminue, $K_M$ ne change pas.
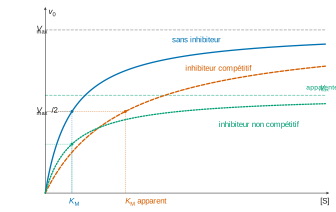
*Unités arbitraires.*
Deux exemples à forte portée :
- La **RuBisCO** carboxyle le ribulose-1,5-bisphosphate (cycle de Calvin), mais O₂ est un **ligand compétiteur** du CO₂ dans son site actif. L'activité oxygénase engage la photorespiration, plus forte quand la température augmente. Les plantes en C4 concentrent le CO₂ autour de l'enzyme.
- Dans l'**ATP synthase**, les trois sites β de F₁ changent cycliquement d'affinité pour ADP, Pᵢ et ATP sous l'effet de la rotation de γ, entraînée par le flux de protons dans F₀ ; l'énergie sert surtout à **libérer** l'ATP formé.
**II.2. Transporter et stocker.** La fixation réversible solubilise, véhicule ou neutralise.
- Grâce à l'hémoglobine, le sang transporte environ 70 fois plus d'O₂ que le plasma n'en dissout.
- L'**albumine** fixe les acides gras (acide palmitique de l'annexe), la bilirubine et de nombreux médicaments. Les **lipoprotéines** associent un cœur de triglycérides et d'esters de cholestérol, une monocouche de phospholipides et des apolipoprotéines, qui sont aussi les ligands des récepteurs (apoB-100 et récepteur des LDL).
- Le fer, générateur d'espèces réactives de l'oxygène, est fixé par la **transferrine** et stocké dans la **ferritine**.
- Aux membranes, une **perméase** (GLUT) fixe le glucose sur une face, change de conformation et le libère sur l'autre : le flux est saturable et spécifique. Une **pompe** (Na⁺/K⁺-ATPase : 3 Na⁺ sortent, 2 K⁺ entrent) couple ce cycle à l'hydrolyse de l'ATP. Un **canal ligand-dépendant** (récepteur nicotinique) s'ouvre quand il fixe l'acétylcholine.
*Schéma 5.* Une bicouche avec une perméase, une pompe, un canal et un récepteur : chacune fixe un ligand ; elles diffèrent par ce que la liaison déclenche.
**II.3. Quand le ligand est une macromolécule.**
*Cytosquelette.* L'actine G polymérise en actine F, la tubuline en microtubules ; un nucléotide fixé (ATP pour l'actine, GTP pour la tubuline) contrôle l'assemblage. Son hydrolyse après incorporation affaiblit les contacts, d'où le renouvellement en tapis roulant des filaments d'actine et l'instabilité dynamique des microtubules.
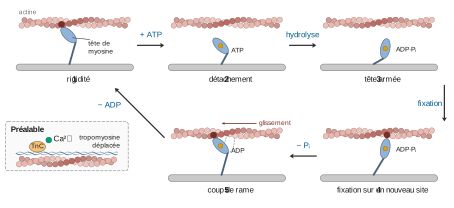
*Contraction.* Le cycle de la tête de myosine comporte cinq étapes :
1. sans nucléotide, la tête est fortement fixée à l'actine (état de rigidité) ;
2. la fixation de l'ATP fait chuter l'affinité pour l'actine, et la tête se détache ;
3. l'hydrolyse en ADP + Pᵢ, qui restent fixés, arme la tête ;
4. la tête chargée d'ADP + Pᵢ **se fixe** sur un nouveau site de l'actine ;
5. la libération de Pᵢ déclenche le coup de rame, puis l'ADP est libéré et l'on revient à l'étape 1.
Le Ca²⁺, en se fixant sur la troponine C, déplace la tropomyosine et démasque les sites de fixation de la myosine sur l'actine. La rigidité cadavérique (absence d'ATP) montre que la **fixation** de l'ATP est nécessaire au **détachement**.
*Adhérence et paroi.* Les **cadhérines** établissent des liaisons homophiles, rigidifiées par le Ca²⁺. Les **intégrines** reconnaissent le motif Arg-Gly-Asp (RGD) de la fibronectine. Chez les végétaux, les **expansines**, actives à pH acide, desserrent les liaisons non covalentes entre microfibrilles de cellulose et hémicelluloses, ce qui permet l'élongation cellulaire.
*Lecture du génome.* Le grand sillon de l'ADN expose, pour chaque paire de bases, un motif de donneurs et d'accepteurs de liaisons hydrogène. Un **facteur de transcription** y engage une hélice α (hélice-tour-hélice, doigt de zinc, glissière à leucine). Dans l'**opéron lactose** :
- le répresseur LacI, fixé sur l'opérateur, bloque la transcription ; l'**allolactose** se fixe sur un site allostérique de LacI, qui perd son affinité pour l'opérateur, et l'opéron est dérépressé ;
- l'activateur CAP ne se fixe en amont du promoteur qu'après avoir fixé l'**AMPc**, abondant quand le glucose manque.
Deux équilibres de liaison réalisent ainsi une logique « lactose présent ET glucose absent ». Chez les eucaryotes, les **récepteurs nucléaires** des hormones stéroïdes (dérivées du cholestérol) sont des facteurs de transcription dont l'activité dépend de la fixation de l'hormone.
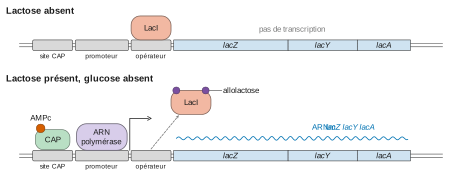
*En haut, l'état de CAP, qui dépend du glucose, n'est pas figuré.*
*Transition* : ces interactions sont réversibles et leur affinité peut changer ; c'est ce qui permet de traiter de l'information.
> [!METHODE]
> Un exemple ne vaut que par ce qu'il démontre. Annoncez-le par sa fonction démonstrative : la RuBisCO montre les limites de la spécificité, la myosine le rôle de la réversibilité, l'opéron lactose la combinaison de deux équilibres.
> [!PIEGE]
> Dans le cycle de la myosine, l'erreur fréquente est d'oublier l'étape de **refixation** de la tête armée sur l'actine avant le coup de rame, ou d'attribuer le détachement à l'hydrolyse de l'ATP. C'est la **fixation** de l'ATP qui détache la tête. Autre piège : ne pas parler d'instabilité dynamique pour l'actine, le terme est réservé aux microtubules.
### Étape 7 — Partie III : une interaction modulable
> [!INDICATION]
> Montrez d'abord que la spécificité d'une réponse hormonale réside dans le récepteur, puis que chaque étage d'une cascade est un nouveau couple protéine – ligand.
> [!INDICATION]
> Pour la régulation, distinguez deux leviers : changer la concentration du ligand ou changer l'affinité de la protéine. Rangez vos exemples selon ces deux leviers et selon l'échelle (voie métabolique, organisme, plante).
> [!INDICATION]
> Pour la dernière sous-partie, demandez-vous pourquoi les sites de liaison sont une cible privilégiée, à la fois pour la sélection naturelle et pour les médicaments ou les pesticides.
#### Solution
**III.1. Récepteurs et transduction.** Un messager n'agit que sur les cellules qui expriment son récepteur : **la spécificité de la réponse est dans le récepteur**. L'interaction récepteur – ligand est spécifique, de haute affinité ($K_d$ de $10^{-10}$ à $10^{-8}\ \mathrm{mol\cdot L^{-1}}$), saturable et réversible, et elle est en plus **transductrice** : la fixation change la conformation du récepteur.
- Les **récepteurs canaux** (récepteur nicotinique, deux acétylcholines) s'ouvrent en une milliseconde environ.
- Les **récepteurs couplés aux protéines G** (récepteurs β-adrénergiques, récepteur du glucagon) font échanger le GDP contre du GTP sur la sous-unité α. Celle-ci active l'adénylate cyclase, et l'AMPc active la PKA.
- Les **récepteurs à activité tyrosine kinase** : le récepteur de l'insuline, dimère préexistant $(\alpha\beta)_2$ relié par des ponts disulfure, change de conformation en fixant l'insuline, puis ses sous-unités β se phosphorylent mutuellement.
Chaque étage est un nouveau couple protéine – ligand (hormone/récepteur, GTP/protéine G, AMPc/PKA) et chaque enzyme activée en active de nombreuses autres : la cascade **amplifie**. Dans le foie, glucagon et adrénaline aboutissent, par PKA, phosphorylase kinase et glycogène phosphorylase, à la libération de glucose-1-phosphate à partir du glycogène.
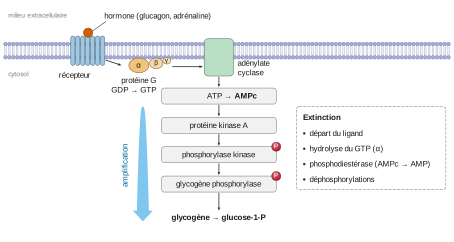
La réversibilité assure l'**extinction** : départ du ligand, hydrolyse du GTP, phosphodiestérase, phosphatases. Elle permet aussi la **désensibilisation** : une stimulation prolongée provoque l'internalisation des récepteurs et diminue $B_{\max}$. La cellule règle sa sensibilité sur $K_d$ et $B_{\max}$.
**III.2. Reconnaître.** Un **anticorps** comporte deux chaînes lourdes et deux chaînes légères ; leurs domaines variables forment le **paratope**, complémentaire d'un **épitope** (quelques acides aminés ou oses). L'interface fait environ 700 à 900 Ų et compte une quinzaine de liaisons faibles ; les $K_d$ descendent jusque vers $10^{-11}\ \mathrm{mol\cdot L^{-1}}$. La diversité des paratopes est produite avant toute rencontre avec l'antigène, par recombinaison V(D)J.
- La **sélection clonale** est un tri par affinité : seuls les lymphocytes B dont le récepteur fixe l'antigène sont activés.
- La **maturation d'affinité** (hypermutation somatique puis sélection dans les centres germinatifs) diminue le $K_d$ au cours de la réponse.
- Le **CMH** présente dans son sillon des peptides de 8 à 10 acides aminés (classe I) ou d'environ 13 à 25 (classe II). Le récepteur T reconnaît le couple peptide – CMH : c'est la **restriction par le CMH**.
*Schéma 9.* Anticorps en Y (chaînes lourdes et légères, domaines variables, Fc), deux paratopes fixant deux épitopes, agrandissement de l'interface.
Chez les végétaux, la symbiose *Rhizobium* – légumineuse débute par un échange de ligands. Les flavonoïdes racinaires sont perçus par la protéine NodD de la bactérie, qui produit des **facteurs Nod** (lipo-chito-oligosaccharides dérivés de la chitine). Ceux-ci sont reconnus par des récepteurs-kinases à motifs LysM, d'où l'incurvation du poil absorbant, le cordon d'infection et la formation du nodule. L'immunité innée végétale repose, elle, sur des récepteurs de motifs microbiens conservés (chitine, flagelline). Chez les Mammifères, enfin, la fixation de glycoprotéines de la zone pellucide par le spermatozoïde déclenche la réaction acrosomique.
**III.3. Réguler et intégrer.** Réguler, c'est changer la concentration d'un ligand ou l'affinité d'une protéine.
- **PFK-1.** Elle catalyse fructose-6-P + ATP → fructose-1,6-bisP + ADP, étape irréversible de la glycolyse. Elle est **coopérative** pour le fructose-6-P (effet homotrope). L'ATP, **substrat** de la réaction, est aussi un **inhibiteur allostérique** : à forte concentration, il se fixe sur un site régulateur distinct et stabilise la forme de faible affinité. Le citrate et H⁺ inhibent, l'AMP, l'ADP et le fructose-2,6-bisP activent. La glycolyse s'ajuste ainsi en quelques instants à la charge énergétique.
- **Glycémie.** Dans la cellule β, la **glucokinase**, de faible affinité (demi-saturation vers 8 mmol·L⁻¹, proche de la glycémie), sert de capteur : son flux suit la glycémie. La hausse du rapport ATP/ADP ferme les canaux K⁺ sensibles à l'ATP, la cellule se dépolarise, le Ca²⁺ entre et l'insuline est sécrétée. L'insuline fait insérer les transporteurs GLUT4 dans la membrane des cellules musculaires et adipeuses, et stimule la glycogénogenèse hépatique. Le glucagon agit en sens inverse par un récepteur couplé aux protéines G.
- **Auxine.** Elle se loge à l'interface entre TIR1 (sous-unité d'une ubiquitine-ligase) et un répresseur Aux/IAA, dont elle augmente l'affinité pour TIR1 (« colle moléculaire »). Le répresseur est ubiquitinylé puis dégradé, ce qui libère les facteurs ARF et la transcription des gènes de réponse.
*Schéma 10.* La glycolyse, la PFK-1 et ses effecteurs (activateurs AMP, ADP, fructose-2,6-bisP ; inhibiteurs ATP, citrate, H⁺), avec une boucle de rétro-inhibition.
**III.4. Une cible pour l'évolution et pour l'Homme.** Les résidus des sites de liaison sont parmi les plus conservés, ce qui permet de les repérer dans les alignements. Les **duplications géniques** suivies de divergence créent de nouvelles affinités : la famille des globines a produit des protéines de réserve, de transport adulte et de transfert placentaire. La **coévolution** hôte – pathogène se joue sur des interfaces de liaison (récepteur viral muté, protéine d'attachement mutée en retour).
La plupart des médicaments sont des ligands :
- les **agonistes** activent le récepteur (salbutamol sur les récepteurs β₂) ;
- les **antagonistes** occupent le site sans l'activer (β-bloquants, curare) ;
- les **inhibiteurs** enzymatiques agissent de façon compétitive ou non ;
- les **inhibiteurs irréversibles** sont covalents : l'aspirine acétyle une sérine de la cyclo-oxygénase et bloque la conversion de l'acide arachidonique en prostaglandines.
Le **glyphosate**, analogue du phosphoénolpyruvate, inhibe l'EPSP synthase de la voie des acides aminés aromatiques, absente chez les animaux. Les organophosphorés phosphorylent la sérine active de l'acétylcholinestérase, et les résistances tiennent souvent à une mutation de la cible qui en diminue l'affinité. Ces interactions sont enfin des outils : ELISA, chromatographie d'affinité (étiquette polyhistidine sur ion métallique immobilisé), couple avidine – biotine.
> [!PIEGE]
> Trois erreurs à éviter dans cette partie. La première est d'écrire qu'une enzyme allostérique « n'est pas régulée par son substrat » : l'ATP est à la fois substrat et inhibiteur de la PFK-1, et la PFK-1 est coopérative pour le fructose-6-P. La deuxième est de dire que l'insuline « fait dimériser » son récepteur : c'est un dimère préexistant. La troisième est d'écrire que le glucose est « détecté par GLUT2 » : le transporteur fait entrer le glucose, c'est la glucokinase qui joue le rôle de capteur.
> [!METHODE]
> Pour rattacher un exemple de physiologie au sujet, nommez explicitement la protéine, son ligand et la grandeur qui varie : la concentration du ligand, l'affinité ($K_d$) ou le nombre de sites ($B_{\max}$). Cette phrase suffit à transformer une récitation en démonstration.
> [!JURY]
> Dans une synthèse, les contenus de transduction ou d'immunologie ne sont recevables que comme illustrations du fil directeur. Chaque paragraphe doit comporter une phrase qui les y rattache.
### Étape 8 — Rédiger la conclusion
> [!INDICATION]
> La conclusion répond à la problématique. Reprenez les deux temps de votre question : comment la faiblesse donne la spécificité, et ce que la réversibilité rend possible.
> [!INDICATION]
> Pour l'ouverture, cherchez un prolongement qui découle réellement du développement : une avancée récente sur la prédiction des complexes, ou une conséquence évolutive de l'action humaine sur ces interactions.
#### Solution
L'interaction protéine – ligand repose sur un petit nombre de principes :
- un site de liaison façonné par le repliement ;
- une complémentarité stérique et chimique avec le ligand ;
- des liaisons non covalentes individuellement faibles mais additives ;
- un équilibre caractérisé par une constante de dissociation ;
- une saturation due au nombre fini de sites ;
- la possibilité qu'un autre ligand modifie l'affinité du premier.
De ces principes découlent la catalyse, le transport et le stockage, l'architecture et le mouvement cellulaires, la lecture du génome, la communication, la reconnaissance immunitaire et symbiotique et la régulation intégrée.
**La propriété décisive n'est pas la force de la liaison mais sa réversibilité** : parce que chaque liaison est de l'ordre de l'agitation thermique, le complexe se défait, et parce qu'il se défait, il peut être régulé et porter une information. L'affinité n'est pas maximisée mais ajustée à la fonction, et c'est sur elle qu'agit la sélection naturelle.
**Ouverture.** La prédiction des structures protéiques et des complexes protéine – ligand à partir des séquences a beaucoup progressé ces dernières années et permet de concevoir des ligands, voire des protéines, aux affinités choisies. Mais toute interaction ciblée par l'Homme devient un lieu de sélection : les résistances aux herbicides, aux insecticides et aux antibiotiques par modification de la cible rappellent qu'agir sur une interaction moléculaire, c'est agir sur une population qui évolue.
> [!PIEGE]
> Une conclusion qui se contente de résumer le plan, ou qui ouvre sur un sujet sans rapport (« et les lipides ? »), ne rapporte presque rien. La première phrase doit répondre à la problématique.
## Bilan
**Méthodes à retenir.**
- Définir chaque terme et délimiter le sujet, en particulier en distinguant interaction non covalente et modification covalente.
- Construire un plan progressif (mécanisme, puis fonctions, puis modulation et intégration) plutôt qu'un plan par catégories.
- Faire de chaque exemple une démonstration : protéine, ligand, grandeur qui varie, conséquence fonctionnelle.
- Lire toute courbe de saturation par sa forme, son plateau et sa demi-saturation.
- Faire les calculs de tête avec des repères : $RT \approx 2{,}5$ kJ·mol⁻¹, $RT\ln 10 \approx 5{,}7$ kJ·mol⁻¹ par décade de $K_d$.
**Prérequis à revoir.**
- Liaisons faibles et effet hydrophobe ; structure des protéines.
- Isotherme de saturation, équation de Michaelis – Menten (démonstration en état quasi stationnaire), équation de Hill.
- Myoglobine et hémoglobine (courbes, T/R, 2,3-BPG, effet Bohr, HbF).
- Cycle de la myosine en cinq étapes ; opéron lactose ; trois familles de récepteurs ; cascade de l'AMPc.
- Régulation de la PFK-1 et de la glycémie ; facteurs Nod ; auxine.
**Questions transposables.** Ce schéma de pensée resservira pour de nombreux sujets proches :
- « Les protéines, des molécules de la reconnaissance » ;
- « Spécificité et affinité en biologie » ;
- « Les enzymes allostériques » ;
- « Les récepteurs » ;
- « La communication cellulaire » ;
- « Relations structure – fonction des protéines ».
Dans tous les cas, la même démarche s'applique : partir des propriétés physico-chimiques du complexe, montrer qu'elles engendrent les fonctions, puis que leur modulation fonde la régulation.
Aide sur le corrigé
Connectez-vous pour demander une explication.